
Una guía genética describe una parvada ideal; un presupuesto necesita anticipar una parvada concreta. Entre ambas cosas hay una brecha estadística y operativa: transformar registros de edad, postura, peso de huevo, consumo y mortalidad en una previsión coherente de huevos, kilogramos y alimento.
Ése fue el problema que quise resolver. La solución no consistió en copiar una curva estándar, sino en construir un sistema con dos niveles. En el primero, una familia de ecuaciones representa la evolución biológica de cuatro variables. En el segundo, el programa de repoblación decide qué parvadas estarán activas, con qué edad y durante qué semanas; después agrega sus aportaciones para formar el presupuesto de producción.
1. El problema: convertir biología en presupuesto
El porcentaje de postura no es constante. Parte de valores bajos cuando inicia la madurez sexual, aumenta con rapidez, alcanza un máximo y luego disminuye. Al mismo tiempo, el huevo gana peso, el consumo diario cambia y las bajas reducen el número de aves expuestas. Cada proceso tiene su propia forma, pero todos terminan en el mismo estado de resultados productivo.
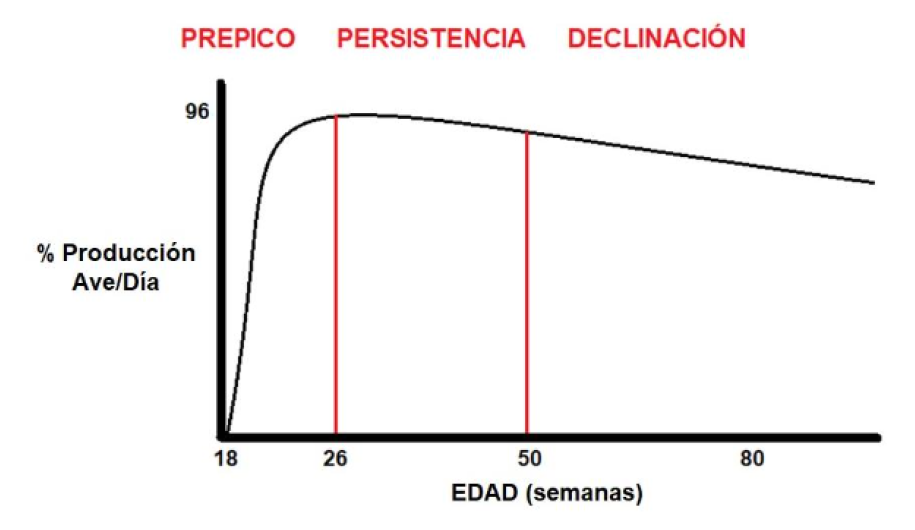
Una desviación pequeña puede amplificarse. Sobreestimar la persistencia eleva las piezas presupuestadas durante muchas semanas; subestimar el peso del huevo altera los kilogramos vendibles; un error en consumo distorsiona la compra de alimento; y la mortalidad cambia los ave-día sobre los cuales se calculan las tres variables restantes. Por eso no basta con una ecuación que “se vea bien”. Debe ser interpretable, estimable con datos disponibles y suficientemente estable fuera de la muestra usada para ajustarla.
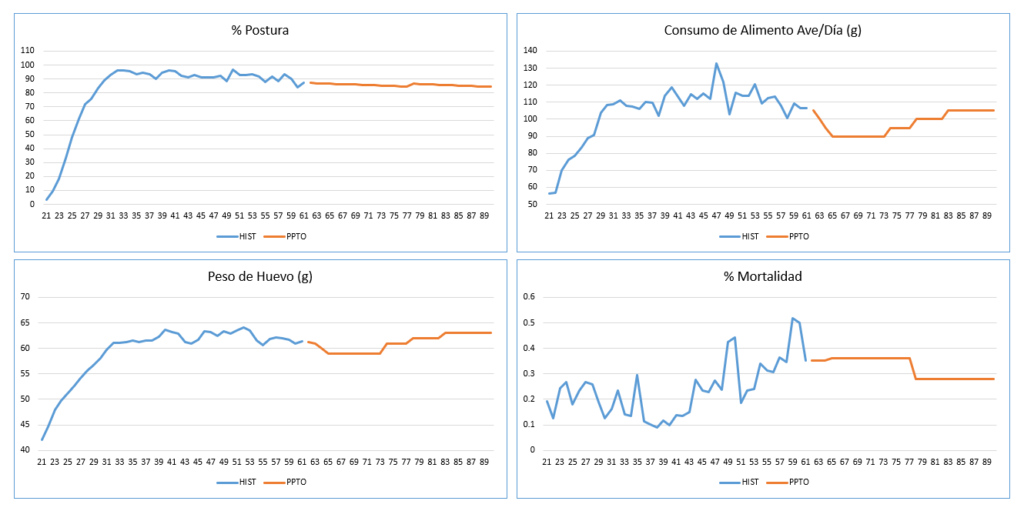
La solución propuesta conecta cuatro pronósticos: porcentaje de postura, peso promedio del huevo, consumo de alimento por ave y día, y mortalidad. La curva de postura es el punto de partida porque tiene la geometría más compleja. Una vez elegida su estructura, parte de esa lógica puede aprovecharse para peso y consumo. La mortalidad exige otro tratamiento.
2. Regresión no lineal y elección del modelo de Yang
En estadística, “no lineal” no significa simplemente que el dibujo sea curvo. Una parábola como y = β0 + β1t + β2t2 sigue siendo lineal en sus coeficientes. Una función es no lineal cuando los parámetros desconocidos entran en exponentes, denominadores o productos que impiden estimarlos mediante una sola regresión lineal. El ajuste requiere iteraciones, valores iniciales y criterios de convergencia, como explican los métodos de mínimos cuadrados no lineales del NIST.
Para postura consideré las principales familias usadas históricamente en aves. No todas son rivales independientes: algunas son reparametrizaciones de la misma geometría. La comparación conceptual queda así:
| Modelo | Forma típica | Fortaleza | Limitación relevante |
|---|---|---|---|
| Wood | AtBe−Ct | Ascenso y descenso con tres parámetros | El inicio depende mucho del origen de la edad y del valor de B |
| McNally | AtBe−Ct+D√t | Mayor flexibilidad alrededor del pico | Más parámetros, sensibilidad a valores iniciales y riesgo de sobreajuste |
| Compartimental | Combinación de procesos exponenciales | Lectura fisiológica del ascenso y la declinación | Puede representar mal la dispersión en madurez sexual |
| Adams–Bell | Ascenso saturante menos declinación lineal | Buena descripción de curva completa en algunos conjuntos | La forma original contiene parámetros redundantes y su cola puede volverse negativa |
| Logística curvilínea | Ae−bt/(1+Ce−kt) | Ascenso logístico y pérdida de persistencia | Con C>0 es la misma familia que Yang bajo otro parámetro |
| Yang | ae−bt/[1+e−c(t−d)] | Separa maduración sexual y declinación posterior | Necesita restricciones y buena cobertura temporal para identificar sus parámetros |
La evidencia publicada no ofrece un campeón universal
El trabajo original de Yang, Wu y McMillan (1989) introdujo una modificación del modelo compartimental para incorporar la variación entre aves en la edad de madurez sexual. En dos líneas White Leghorn comparó Yang con el compartimental y Wood, y evaluó el pronóstico de la producción total usando registros parciales de las semanas 21–35 y 21–40. Yang resultó especialmente sólido frente a Wood y aportó una interpretación biológica clara del comienzo de postura.
Otros trabajos obligan a matizar la conclusión. Cason y Britton (1988) encontraron que Adams–Bell y una función logística pronosticaban mejor que el compartimental en parvadas comerciales de primer ciclo. Cason (1990) obtuvo mejor ajuste de curva completa con Adams–Bell y mostró que una línea pospico podía igualar o superar a modelos no lineales para ciertos horizontes de pronóstico. En la comparación de Prasad y Singh (2009), el ganador volvió a depender del conjunto de datos y del criterio; y Savegnago y colaboradores (2011) mostraron que una red neuronal podía superar a una logística en validación sobre otra generación de White Leghorn.
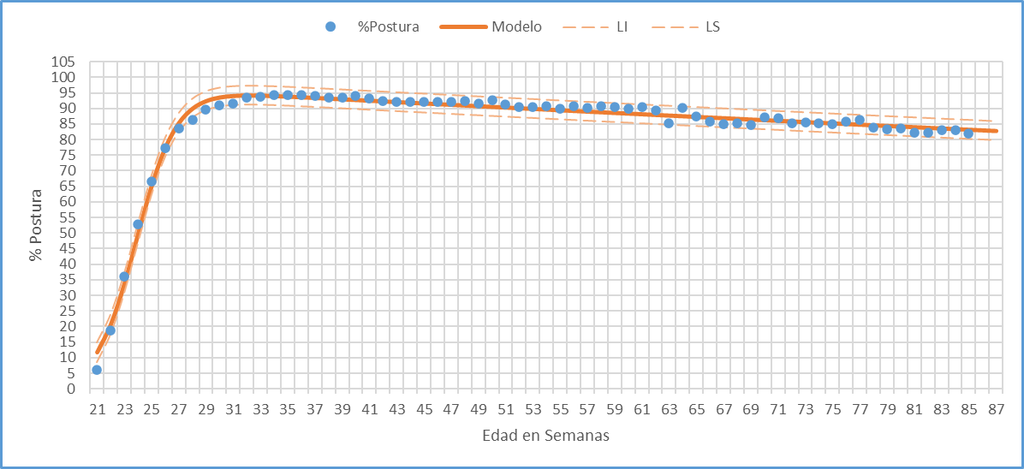
La conclusión bibliográfica defendible es específica: Yang merece estar entre los candidatos principales porque representa con pocos parámetros la entrada a postura y la pérdida de persistencia, y porque su artículo original mostró capacidad de pronóstico con registros parciales. La literatura no demuestra que sea siempre superior. Por eso sometí esa elección a una comparación local con la serie semanal presentada más adelante. El gráfico siguiente documenta el ajuste de Yang; las tablas de validación permiten juzgarlo frente a las alternativas.
Qué representa la ecuación de Yang
La fracción logística del denominador describe la incorporación progresiva de las aves a la postura. El parámetro d desplaza esa transición en el tiempo y c controla qué tan concentrada ocurre. El factor e−bt representa la pérdida de persistencia; b determina su velocidad. Finalmente, a escala la curva, pero no equivale por sí solo al porcentaje máximo.
Esta separación es la principal ventaja científica de Yang: el ascenso y la declinación se modelan como procesos distintos. También permite derivar una comprobación útil. Si c>b>0, la edad teórica del pico es:
La fórmula muestra que d no es automáticamente la semana pico. Es el centro de la transición logística; el pico surge del equilibrio entre maduración y declinación. Después de cada ajuste conviene verificar que la edad y el nivel del máximo sean biológicamente plausibles, que la curva no supere 100% y que el algoritmo haya convergido desde varios valores iniciales.
La logística curvilínea Ae−bt/(1+Ce−kt) merece una precisión adicional. Al escribir C=ekd, se obtiene exactamente la forma de Yang. Por eso dos implementaciones pueden parecer modelos distintos y, sin embargo, describir la misma familia bajo otro sistema de parámetros. Contarlas como rivales independientes inflaría artificialmente la comparación.
Cómo debe validarse la elección
El coeficiente de determinación y el error del ajuste interno sirven para diagnosticar, pero no prueban capacidad predictiva. Como ocurre con otros métodos de pronóstico de series de tiempo, la comparación más útil imita la decisión: se ajusta cada modelo hasta una semana de corte, se pronostica el resto del ciclo y se repite con varios cortes. También debe dejarse una parvada completa fuera del ajuste para comprobar si los parámetros aprendidos se transfieren.
La comparación utilizó 65 observaciones semanales, de la semana 21 a la 85. Todos los modelos recibieron la misma respuesta y se estimaron por mínimos cuadrados no ponderados. Para Wood y McNally se definió el tiempo como semanas transcurridas desde la semana 20, de modo que su argumento fuera siempre positivo. La logística curvilínea no se ajustó por separado porque, bajo la reparametrización explicada arriba, reproduce la familia de Yang.
Primero ajusté cada curva usando el ciclo completo. RMSE y MAE están expresados en puntos porcentuales de postura. El R² ajustado corrige parcialmente por el número de parámetros y AICc penaliza complejidad en muestras pequeñas; en ambos casos, menor AICc indica mejor equilibrio entre ajuste y número de parámetros.
| Modelo | RMSE | MAE | R² ajustado | AICc |
|---|---|---|---|---|
| Adams–Bell | 1.452 | 1.167 | 0.9910 | 57.19 |
| Yang | 1.584 | 1.228 | 0.9893 | 68.44 |
| Compartimental | 3.518 | 2.137 | 0.9481 | 169.91 |
| Logística simple | 3.621 | 3.154 | 0.9450 | 173.67 |
| McNally | 5.530 | 4.227 | 0.8696 | 230.98 |
| Wood | 6.788 | 5.061 | 0.8067 | 255.36 |
El ajuste completo responde qué curva describe mejor estos datos conocidos, pero el presupuesto plantea otra pregunta: qué ocurre cuando el futuro todavía no existe. Para aproximarla realicé una validación de origen móvil. Ajusté los modelos con información disponible hasta las semanas 35, 40, 45, 50, 55, 60, 65 y 70, y en cada caso reservé todas las semanas posteriores para evaluar el pronóstico. Como referencia añadí una regresión lineal estimada únicamente desde la semana 31; ésta representa una estrategia pospico y no una curva de ciclo completo.
| Modelo | RMSE promedio | RMSE mediano | Rango promedio | Cortes ganados |
|---|---|---|---|---|
| Lineal pospico | 6.746 | 3.583 | 1.75 | 6 de 8 |
| Yang | 4.835 | 4.988 | 2.13 | 0 |
| Adams–Bell | 4.900 | 5.117 | 3.25 | 0 |
| Logística simple | 6.553 | 6.702 | 3.50 | 2 de 8 |
| Compartimental | 18.595 | 12.418 | 4.38 | 0 |
| McNally | 28.394 | 24.646 | 6.00 | 0 |
| Wood | 36.359 | 32.982 | 7.00 | 0 |
Los resultados no entregan una victoria absoluta. Adams–Bell gana con claridad el ajuste retrospectivo y su AICc es 11.25 unidades menor que el de Yang. La línea pospico gana seis de ocho cortes una vez que existe suficiente declinación, pero falla cuando se estima demasiado pronto: su RMSE llega a 25.67 al cortar en la semana 35 y a 10.38 al cortar en la 40. Por eso funciona como herramienta condicionada a la fase, no como sustituto de una curva completa.
Yang ofrece el mejor compromiso entre las curvas no lineales de ciclo completo. Su RMSE promedio de pronóstico fue 4.835, frente a 4.900 de Adams–Bell, y superó ligeramente a éste en cada origen temporal. La ventaja promedio es de apenas 1.3%, insuficiente para hablar de superioridad universal con una sola parvada. En los cortes 35 y 40, Yang produjo prácticamente el mismo pronóstico que la logística simple porque los datos todavía no identificaban una declinación: el parámetro b quedó en su frontera cercana a cero.
El ajuste de Yang al ciclo completo estimó un pico de 94.26% en la semana 32.17, cercano al máximo observado de 94.43%. Sin embargo, sus residuos conservaron autocorrelación positiva de primer orden de 0.55 y su mayor error ocurrió en la semana 21. Esto indica que ni Yang ni Adams–Bell absorben toda la estructura temporal y que los errores semanales no deben tratarse como observaciones completamente independientes.
Con esta evidencia mantengo Yang como modelo operativo central, pero por una decisión multicriterio: queda cerca del mejor ajuste completo, es la curva no lineal más estable en la validación temporal, separa maduración y persistencia, y se conecta limpiamente con los modelos logísticos de peso y consumo. Si el único objetivo fuera reconstruir esta serie después de observarla completa, Adams–Bell sería la elección; si ya se hubiera confirmado el pospico, una línea local sería un competidor muy fuerte.
3. Temperatura y humedad: una mejora plausible que aún debe probarse
La edad resume el desarrollo de la parvada, pero no describe el ambiente. Dos lotes de la misma edad pueden producir de manera distinta si uno atravesó calor sostenido, humedad alta, mala ventilación o una recuperación incompleta. Introducir temperatura y humedad es, por tanto, una hipótesis razonable para explicar parte de los residuos que Yang deja sin capturar.
| Temperatura | Respuesta fisiológica y productiva resumida |
|---|---|
| 18–24 °C | Intervalo señalado como favorable para desempeño y conversión alimenticia. |
| 25–31 °C | Ligera disminución del consumo de alimento. |
| 32–36 °C | Mayor reducción del consumo, menor actividad y caídas en postura, peso del huevo y calidad de la cáscara. |
| 37–39 °C | Reducción severa del consumo, más huevos rotos y riesgo de mortalidad. |
| 40–42 °C | Jadeo severo, alcalosis respiratoria y mayor riesgo de mortalidad por postración. |
| Más de 42 °C | Situación de emergencia que requiere enfriamiento inmediato. |
| Variable | Efecto atribuido a las altas temperaturas |
|---|---|
| Producción de huevos | Disminución al alcanzar aproximadamente 30 °C. |
| Peso del huevo | Reducción indicada de 0.4% por cada grado entre 23 y 27 °C, y de 0.8% por cada grado por encima de 27 °C. |
| Consumo de alimento | Reducciones indicadas de 1.4% por grado entre 20–25 °C; 1.6% entre 25–30 °C; 2.3% entre 30–35 °C; y 4.8% por encima de 35 °C. |
La evidencia experimental respalda la dirección general, aunque también demuestra que el efecto no es una constante. En 120 ponedoras de 52 semanas mantenidas durante 42 días a 22, 27 o 32 °C con 50% de humedad, Kim y colaboradores (2020) observaron que 32 °C redujo de manera marcada el consumo, la postura, el peso y la masa de huevo frente a 22 y 27 °C. En ese experimento, el consumo del grupo a 32 °C fue aproximadamente 18–22% menor que el del grupo a 22 °C; el efecto dependió del tiempo de exposición.
La humedad tampoco debe añadirse como un corrector fijo. En 180 ponedoras Hy-Line Brown mantenidas a 30 °C, Kim y colaboradores (2022) compararon 25%, 50% y 75% de humedad relativa. No detectaron diferencias significativas en postura, peso o masa de huevo, pero sí menor consumo y señales fisiológicas de estrés con 75%. En otro experimento, Lee y colaboradores (2024) compararon cinco combinaciones de temperatura y humedad: la postura cayó con un índice temperatura-humedad severo, y a unos 29 °C el grupo cercano a 82% de humedad consumió menos que el grupo cercano a 63%. Esto justifica estudiar una interacción: la humedad puede agravar el calor sin producir el mismo efecto en todas las respuestas.
Tres maneras de plantear la extensión
La opción más simple sería una variable indicadora: 1 durante un periodo de calor y 0 fuera de él. Su coeficiente mediría un desplazamiento promedio de la curva. Es fácil de comunicar, pero mezcla intensidad, duración y recuperación en una sola categoría.
Una segunda opción sería usar un umbral: la temperatura no cambia el pronóstico hasta rebasar un valor τ, y a partir de allí el efecto crece con cada grado adicional. Matemáticamente puede añadirse βT·max(0,T−τ) a la curva. Esta forma se parece más a la respuesta fisiológica, aunque exige decidir si el umbral se fija con literatura o se estima con suficientes datos.
La tercera opción combinaría temperatura y humedad mediante sus términos principales y una interacción, o mediante un índice temperatura-humedad. En el primer caso puede saberse si la humedad cambia la pendiente térmica; en el segundo se obtiene una sola medida de carga ambiental. Ninguna formulación debe darse por válida antes de registrar temperatura y humedad a la altura de las aves, resumir duración y extremos, probar rezagos y verificar que la covariable estará disponible cuando se genere el presupuesto.
Estas extensiones quedan planteadas como trabajo futuro. No forman parte de los resultados presentados aquí. La prueba exploratoria con temperatura mostró una ruta posible, pero incorporarla como resultado definitivo sin evaluar humedad, rezagos y validación fuera de muestra confundiría una idea prometedora con una mejora ya demostrada.
4. De Yang a peso de huevo, consumo y mortalidad
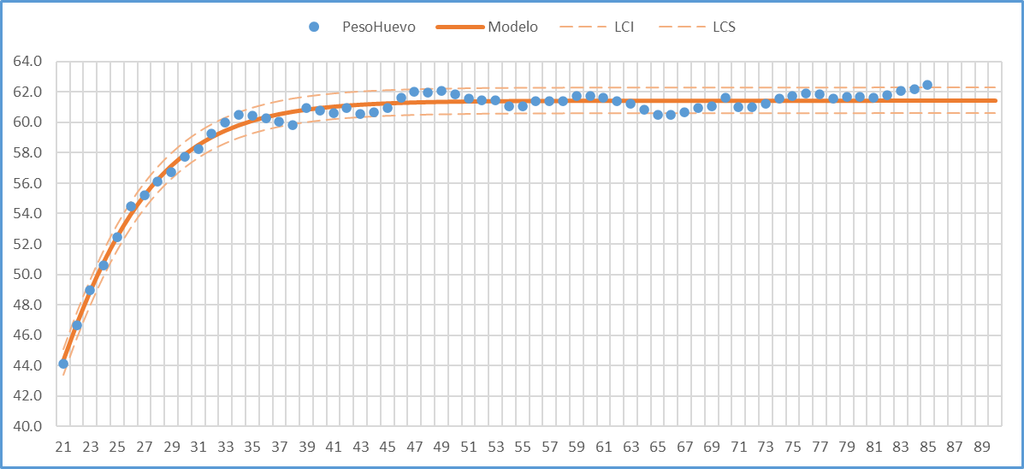
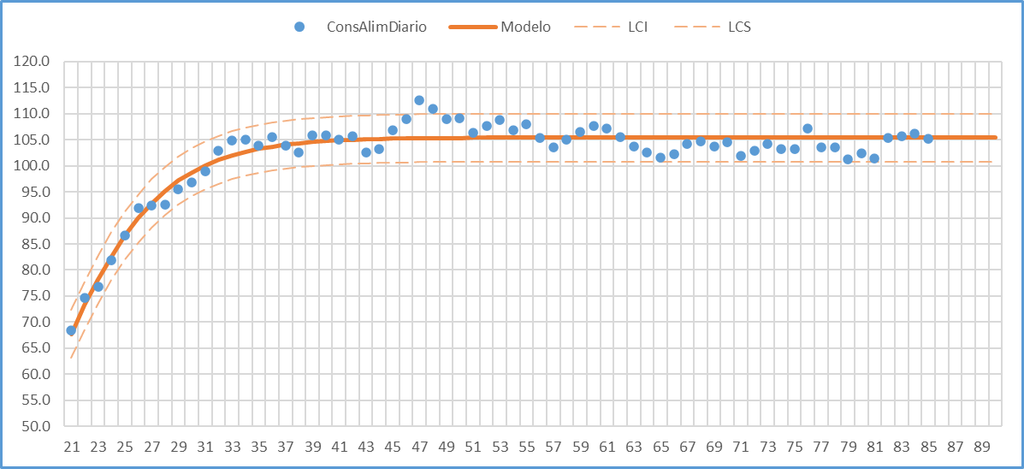
La ecuación de Yang contiene dos componentes: una transición logística y una declinación exponencial. Peso de huevo y consumo diario no muestran necesariamente una caída pospico comparable a la postura; en los datos históricos crecen con la edad y se aproximan a una meseta. Esto sugiere retirar el término de declinación y conservar el componente logístico.
Si en Yang se fija b=0, entonces e−bt=1 y queda:
No significa que peso o consumo se expliquen biológicamente por la postura. La derivación es estructural: se conserva una geometría de maduración común, pero cada respuesta recibe sus propios parámetros. Para peso de huevo se estima aW, cW, dW; para consumo, aF, cF, dF. Sus mesetas, velocidades y semanas de transición pueden ser distintas.
Por qué mortalidad necesita otro modelo
La mortalidad semanal es un conteo condicionado por el número de aves vivas. No tiene por qué seguir una curva logística suave: puede permanecer muy baja durante varias semanas y saltar por enfermedad, fallas ambientales o accidentes. Una regresión lineal con edad y temperatura puede funcionar como aproximación presupuestal local, pero puede producir porcentajes negativos y trata de la misma manera una tasa calculada sobre mil aves que otra calculada sobre cien mil.
La mejora natural es modelar las bajas y su exposición. Con registros agregados, una distribución binomial usa como denominador las aves al inicio de la semana; una beta-binomial permite variación adicional entre parvadas. Si se dispone de fecha individual de baja, un modelo de supervivencia estima el riesgo a lo largo del ciclo y maneja correctamente a las aves que llegan vivas al final. En datos comerciales, conviene añadir efectos por granja o parvada y separar una mortalidad basal de eventos extraordinarios.
No es sólo una preferencia teórica. Un estudio de mortalidad asociada al amontonamiento en parvadas libres modeló las bajas diarias como conteos de Poisson, incluyó el tamaño de la parvada como exposición y un efecto aleatorio de parvada (Gray y colaboradores, 2023). En otra aplicación con más de doce mil ponedoras, la supervivencia se representó como registros vivos/muertos repetidos y se compararon modelos lineales y generalizados (Alemu y colaboradores, 2015). Para un primer presupuesto puede conservarse una tasa semanal sencilla; para inferencia y gestión de riesgo, conteos o supervivencia son más adecuados.
5. Cómo las cuatro variables construyen el presupuesto avícola
Las cuatro curvas se convierten en presupuesto mediante una cadena de unidades comprensible:
- Aves finales = aves iniciales − bajas pronosticadas.
- Ave-día = promedio de aves vivas durante la semana × 7 días.
- Huevos = ave-día × porcentaje de postura expresado como fracción.
- Kilogramos de huevo = huevos × peso medio del huevo ÷ 1,000.
- Kilogramos de alimento = ave-día × consumo diario por ave ÷ 1,000.
- Conversión alimenticia = kilogramos de alimento ÷ kilogramos de huevo.
Cada paso recibe la salida del anterior. La mortalidad modifica las aves disponibles; la postura determina las piezas; el peso convierte piezas en masa; el consumo calcula el insumo principal. Por eso un error persistente en cualquiera de las cuatro curvas termina afectando volúmenes, compras, costos y conversión.
El programa de repoblación funciona como filtro temporal
Las ecuaciones describen lo que haría una parvada a cierta edad; el programa lineal de repoblación decide qué edad tendrá cada parvada en cada semana del presupuesto. Para cada lote define una fecha de entrada y un número de aves. La edad presupuestal se obtiene restando la semana de entrada a la semana que se quiere pronosticar.
Si el resultado es negativo, la parvada todavía no existe y no aporta producción. Si cae dentro de su ciclo, el sistema consulta las cuatro curvas a esa edad. Si rebasa la semana de salida, deja de contribuir. Ese filtro evita asignar huevos o consumo a lotes que todavía no llegan o que ya fueron desalojados.
El cálculo semanal sigue cinco pasos:
- seleccionar las parvadas activas según sus fechas de entrada y salida;
- calcular la edad de cada una;
- pronosticar postura, peso, consumo y mortalidad para esa edad;
- transformar esos pronósticos en aves finales, piezas, kilogramos y alimento;
- sumar las aportaciones de todas las parvadas activas y asignarlas al mes correspondiente.
Así, la producción total de un mes es la suma de los días que cada parvada estuvo activa dentro de ese mes. Cuando una semana cruza el cierre mensual, sus cantidades se reparten por días para conservar el total. El mismo esquema permite ensayar escenarios de capacidad, intervalos de repoblación, tamaño de lote, edad de retiro y restricciones de alojamiento.
Esta conexión también define el criterio económico de validación. Un modelo de postura puede tener un ajuste estadístico excelente y aun así ser inconveniente si retrasa el pico, exagera la persistencia o concentra el error cerca del cierre de mes. Igual que en un análisis de variaciones entre lo real y el presupuesto, el mejor modelo es el que reduce errores materiales en las cantidades que se compran, producen y venden.
6. Alcance, límites y próximos pasos
El principal acierto del sistema es convertir una curva biológica en una arquitectura presupuestal completa. Yang aporta una representación compacta e interpretable de la postura; la restricción logística ofrece una transición natural hacia peso de huevo y consumo; la mortalidad actualiza la población expuesta; y la repoblación sitúa cada parvada en el calendario operativo.
Su segunda ventaja es la auditabilidad. Cada variable conserva su unidad y su papel. Puede rastrearse si un desvío de kilogramos provino de menos piezas, menor peso, más bajas o una fecha de entrada distinta. Esa separación es valiosa para aprender del error y actualizar el presupuesto sin esconder decisiones operativas dentro de la ecuación.
Las limitaciones también son claras. La superioridad de Yang no debe generalizarse más allá de las poblaciones y horizontes donde se compare. Los parámetros pueden ser inestables si sólo se observan semanas posteriores al pico o si todavía no aparece suficiente declinación. Una curva promedio no reproduce choques sanitarios ni cambios de dieta. Las tablas térmicas orientan, pero no sustituyen mediciones ambientales propias. Y una tasa lineal de mortalidad simplifica una variable que en realidad es discreta, dependiente de la exposición y propensa a eventos extremos.
La comparación realizada aporta evidencia empírica, pero proviene de una sola parvada. El siguiente trabajo debe repetir la validación dejando fuera parvadas completas, estratificar por línea genética y granja, y medir el efecto final sobre piezas, kilogramos y alimento. También conviene probar una estrategia adaptativa: Yang para construir el ciclo completo y una referencia lineal local cuando la declinación pospico ya esté confirmada. Así podrá saberse si la pequeña ventaja predictiva de Yang sobre Adams–Bell se conserva en poblaciones nuevas y si resulta económicamente relevante.
Después puede evaluarse la mejora climática sin inflar el modelo: primero temperatura por encima de un umbral; luego humedad e interacción; por último rezagos, duración del estrés y recuperación. La versión ampliada debe ganar fuera de muestra y producir una mejora económicamente relevante. Para mortalidad, el avance más importante sería pasar de porcentajes lineales a conteos o supervivencia con efectos de parvada y escenarios de choque.
La aplicación potencial rebasa el presupuesto anual. La misma estructura puede apoyar compras de alimento, planeación de inventarios, capacidad de empaque, comparación de granjas y simulación de fechas de repoblación. Su valor no reside en declarar perfecta una ecuación, sino en conectar hipótesis biológicas, evidencia observable y decisiones que pueden comprobarse cada semana.